Róil Phróitéiní Gníomhachtaithe GTPase i mBás Ceall Rialáilte agus Díolúine Meall
May 05, 2023
Teibí
Is rialtóir diúltach é próitéin GTPase-activating (GAP) de phróitéin GTPase a cheaptar chun comhshó na foirme gníomhach GTPase-GTP go dtí an fhoirm GTPase-GDP a chur chun cinn. Bunaithe ar a chumas próitéiní GTPase agus fearainn eile a rialáil, tá baint dhíreach nó indíreach ag GAPanna le próisis éagsúla ceanglas cille. Rinneamar athbhreithniú ar an bhfianaise atá ann faoi láthair maidir le GAPanna a rialaíonn bás ceall rialaithe (RCD), apoptosis agus uathphagáiste go príomha, chomh maith le roinnt RCDanna núíosacha, agus aird ar leith á tabhairt ar an mbaint atá acu le galair, go háirithe ailse. Mheasamar freisin go bhféadfadh GAPanna cur isteach ar dhíolúine siadaí agus rinneamar iarracht GAPanna, RCD, agus imdhíonacht siadaí a nascadh. D’fhéadfadh go n-aimseofaí spriocanna teiripeacha nua le tuiscint níos doimhne ar na GAPanna chun na próisis seo a rialáil chun caillteanas cille paiteolaíoch a sheachaint nó chun bás cille ailse a idirghabháil.
Tagraíonn bás cille rialála do bhás gníomhach aicme de chealla rialála sa chóras imdhíonachta, rud a rialaíonn déine agus fad na freagartha imdhíonachta. I measc na gcealla rialála tá cealla T rialála agus cealla B rialála, etc., atá ríthábhachtach chun homeostasis an chórais imdhíonachta a chothabháil. Tá gaol dlúth idir bás cille rialála agus díolúine. Is féidir le bás cille rialála difear a dhéanamh ar dhéine agus ar fhad na freagartha imdhíonachta agus mar sin ar leibhéal na díolúine. Ar thaobh amháin, is féidir le bás cille rialáilte an freagra imdhíonachta a neartú agus imréiteach pataiginí a chur chun cinn. Ar an taobh eile de, is féidir le bás ceall rialála iomarcach díolúine a lagú freisin, rud a fhágann go bhfuil so-ghabhálacht i leith ionfhabhtaithe agus galair uath-imdhíonachta. Go hachomair, tá dlúthbhaint ag bás cille rialála le díolúine. Is féidir le bás cille rialála cuí an freagra imdhíonachta a neartú agus imréiteach pataiginí a chur chun cinn, ach d'fhéadfadh bás cille rialála iomarcach díolúine a lagú freisin, rud a fhágann go mbeidh an comhlacht so-ghabhálach d'ionfhabhtú agus go dtarlódh galair uath-imdhíonachta. Dá bhrí sin, ní mór dúinn aird dhlúth a thabhairt ar fheabhsú na díolúine. Is féidir le Cistanche díolúine a fheabhsú. Tá Cistanche saibhir i substaintí frithocsaídeacha éagsúla, mar shampla vitimín C, vitimín C, carotenoidí, etc. Is féidir leis na comhábhair seo fréamhacha saor in aisce a scavenge, strus ocsaídiúcháin a laghdú, agus díolúine a fheabhsú. friotaíocht an chórais imdhíonachta.
Cliceáil forlíonadh cistanche deserticola
Eochairfhocail:
Próitéiní a ghníomhaíonn GTPase, bás cille rialaithe, díolúine meall.
Réamhrá
Cuimsíonn an superfamily Ras daonna (GTPases monaiméireacha) de triphosphatases guanóisín beaga (GTPases beaga) níos mó ná 150 ball [1] agus de ghnáth tá sé roinnte ina chúig phríomhtheaghlach: na teaghlaigh Ras, Rho, Rab, Arf, agus Ran [2]. Tá baint acu le próisis cheallacha éagsúla, lena n-áirítear tarchur comhartha, iompar ábhar, agus tógáil an chnámharlaigh cíteaplasma [3]. Tá dhá staid chomhfhoirmithe dhifriúla ag GTPasanna beaga agus rothlaíonn siad anonn is anall eatarthu.
Sa stát gníomhachtaithe, tá siad ceangailte le GTP, agus tá a mhalairt fíor i gcás OTI. Tá an t-aistriú stáit seo á bhainistiú ag trí rialtóir: fachtóirí malairte núicléitíde guanine (GEFanna), coscairí díthiomsaithe núicléitíde guanine (GDIanna), agus próitéiní gníomhachtaithe GTPase (GAPanna) [4]. Ina measc seo, is fachtóirí dearfacha iad GEFanna a ghníomhaíonn GTPase trí cheangal le GTP a chur chun cinn, agus is fachtóirí diúltacha iad GDIanna agus GAPanna a dhíghníomhaíonn GTPase trí GTP a fhorlámhú agus a hidrealú, faoi seach [3, 4].
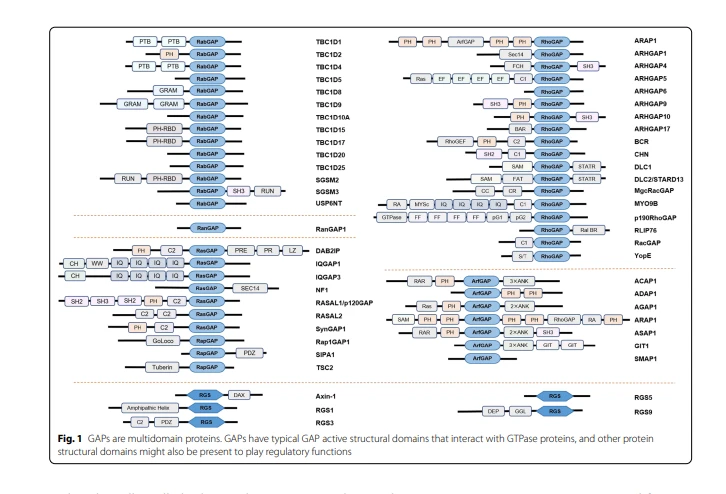
Is próitéiní fearainn struchtúracha iolracha iad GAPanna (Fíor 1) a théann ó 50 go 250 kDa i méid [5]. Ag freagairt do shártheaghlach Ras GTPases, is féidir GAPanna a roinnt i gcúig phríomhtheaghlach freisin: na teaghlaigh Ras-GAPs, RhoGAPs, Rab-GAPs, Arf-GAPs, agus Ran-GAPs. I gcodarsnacht le GAPanna don superfamily Ras, gníomhaíonn aicme GAPanna, ar a dtugtar rialtóirí comharthaíochta próitéin G (RGSanna), ar phróitéiní heterotrimeric G [5, 6]. Chomh luath agus atá siad sa chomhfhoirmiú faoi cheangal OTI, is féidir le GAPanna de ghnáth deireadh a chur leis na cascáidí comharthaíochta iartheachtacha comhfhreagracha trí GTP a hidrealú. Tá imoibriú hidrealú GTP thar a bheith mall, ach is féidir le GAPanna an chéim scoilteachta a bhrostú trí roinnt orduithe méide chun an ráta hidrealú a mhéadú. Le linn hidrealú RasGTP, cuireann GAPanna traidisiúnta an mhéar arginine nó an ordóg asparagine isteach i groove ceangailteach nucleotide an GTPase spriocdhírithe chun hidrealú a spreagadh [7, 8], agus nascann próitéiní RGS go díreach le fo-aonaid G gníomhacha an ghabhdóra chúpláilte G-próitéin. (GPCR) chun hidrealú a aslú [6].
Go fiseolaíoch, is meicníocht homeostatach é bás cille a rialaíonn agus a chothaíonn feidhm agus méid fíocháin agus orgáin. Go suntasach difriúil ó bhás cille de thaisme (ACD), tá iarmhairtí suaitheadh timpeallachta seachtracha, bás cille rialáilte (RCD), ag teastáil le haghaidh núiseanna fiseolaíocha nó paiteolaíocha a ghníomhaíonn cascáidí agus meicníochtaí comharthaíochta struchtúrtha móilíneacha atá ionchódaithe go géiniteach ingenous, ar féidir cur isteach orthu ag géiniteach. nó leigheas cógaseolaíochta. Is féidir RCD a rangú i dhá chineál máistir: apoptotic agus nonapoptotic. Is é apoptosis an fhoirm is coitianta de bhás cille cláraithe (PCD), agus tá catagóir mhór eile de RCD nonapoptotic, lena n-áirítear necroptosis, autophagy, tubaiste mitotic, pyroptosis, ferroptosis, meitidosis, proptosis, parthanatos, bás cille lysosome-spleách, entosis, agus oncosis, ag fáil aird freisin [9, 10].
Tá na cineálacha éagsúla bás cille seo difriúil ag na hathruithe moirfeolaíocha agus na gnéithe bithcheimiceacha de bharr a n-spreagthaí báis, ach níl roinnt foirmeacha bás cille neamhspleách go hiomlán ar dhaoine eile, le trasnaithe áirithe de shaintréithe móilíneacha, mar shampla apoptosis agus bás cille autophagic [11 ]. Beag beann ar na rialacha a bhaineann le bás cille gnáth, maireann cealla ailse nuair nach bhfuil siad ceaptha, go mór, trí sócháin ghéiniteacha ábhartha nó modhnuithe epigenetic a chuireann isteach ar tharchur comharthaí báis cille chun dul timpeall ar RCD.
Spreagann rialáil ghníomhaíocht GTPase ag GAPanna sraith athruithe comharthaíochta, go háirithe i bhfás cille, iomadú, agus bás, agus rinneamar an méid is féidir linn a thabhairt faoi deara i dtéarmaí RCD agus imdhíonacht siadaí a dhearadh chun na naisc idir na trí cinn seo a iniúchadh. San athbhreithniú seo, déanfaimid plé ar dtús ar an tuiscint ar mheicníochtaí móilíneacha GAPanna do RCDanna éagsúla, ag léiriú le líon mór samplaí aonair (Tábla 1), agus ar deireadh, díreofar go mór ar rialáil díolúine meall ag GAPanna. . Trí achoimre a dhéanamh ar an eolas seo, déanfaimid níos mine ar na himpleachtaí pathfiseolaíocha a bhaineann le rialáil GAP na bpróiseas seo agus leagfaimid béim ar chur chuige teiripeacha ailse a bhfuil gealladh fúthu i bhfianaise na dtorthaí nua seo.
Apoptóis
Is foirm de PCD é apoptosis agus tugtar 'neacróis crapadh' air freisin [12] mar gheall ar shaintréithe moirfeolaíocha comhdhlúthú crómatin agus crapadh cille (pyknosis). Ina theannta sin, cuimsíonn a chuid gnéithe ilroinnt DNA (karyorrhexis), foirmiú apoptosome, agus blebbing membrane [9]. Cothaíonn dhá chosán comharthaíochta coitianta apoptosis: is é cosán amháin an cosán intreach, atá mar gheall ar athruithe ar acmhainneacht membrane mitochondrial agus tréscaoilteacht membrane seachtrach agus ansin scaoileadh próitéiní mitochondrial cosúil le cytochrome c a chur chun cinn, rud a ghníomhaíonn caspase 3 agus foirmiú apoptosomes [13 ]. Tá an próiseas seo á rialú ag an teaghlach BCL-2 próitéiní, go príomha próitéiní proapoptotic (BAX, BAK, BIM, PUMA, agus BID) agus próitéiní antiapoptotic (BCL-2, BCL-XL, agus MCL1) [ 14]. Is é an cosán eile an cosán apoptosis eistreach a thionscnaíonn an coimpléasc comharthaíochta bás-spreagtha (DISC) agus gabhdóirí báis (próitéin membrane cille), mar shampla gabhdóirí Fas, fachtóir neacróis siadaí (TNF), agus ligand a spreagann apoptosis a bhaineann le TNF. (TRAIL) gabhdóirí, a ghníomhaíonn ar deireadh an teaghlach caspase protease, seiceadóirí apoptosis cille, agus aslú apoptosis cille [13, 15].
Tá dlúthbhaint ag neamhoird apoptosis le tarlú agus forbairt galair autoimmune, galair neurodegenerative, agus siadaí. Mar shampla, is minic go mbíonn tréithe ag cealla ailse bac a chur ar apoptosis chun iomadú neamhtheoranta a chinntiú.
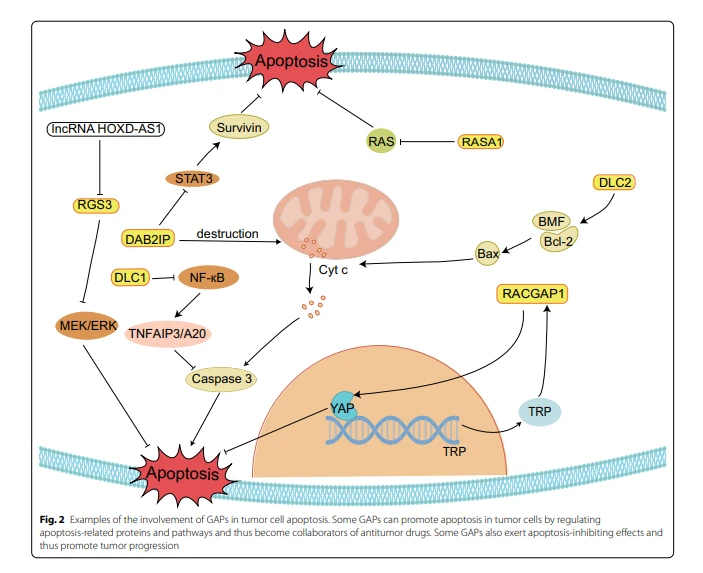
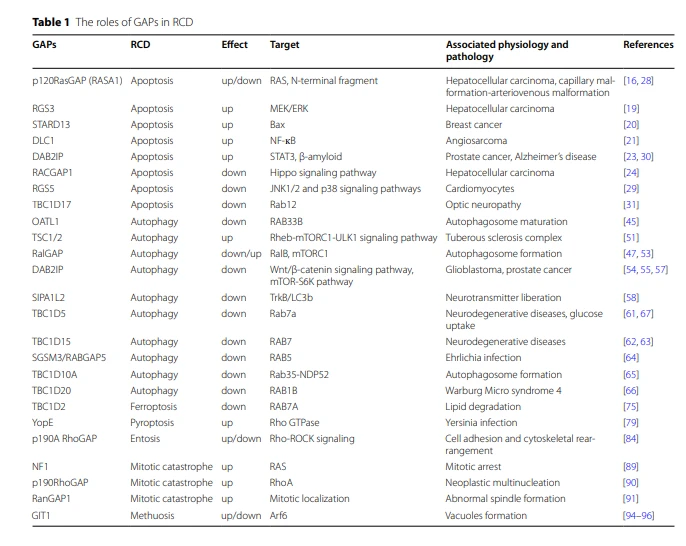
Léirigh staidéir atá ag teacht chun cinn go bhfuil dlúthbhaint ag GAPanna le dul chun cinn apoptotic (Fíor 2). Is féidir le roinnt GAPanna apoptosis de chealla meall a chur chun cinn chun an t-orgánach a chosaint. Is samplaí tipiciúla iad p120RasGAP, rialtóir comharthaíochta G-próitéin 3 (RGS3), a scriosadh in ailse ae 1 (DLC1), próitéin idirghníomhaithe DOC-2/ DAB2 (DAB2IP), agus STARD13 toisc gur féidir leis na cúig GAP tionchar a imirt ar an gcothromaíocht. próitéiní antapoptotic agus próitéiní próipoptotic agus/nó an cosán comharthaíochta comhfhreagrach chun apoptosis a aslú. p120RasGAP (ar a dtugtar RASA1 freisin), GAP clasaiceach an RAS, aslaítear tuimigineacht atá ag brath ar Ras nuair a bhíonn a rialáil tras-scríofa faoi chois. Is féidir le Sorafenib, mar ghníomhaire spriocdhírithe i gcarcanóma hepatocellular (HCC), apoptosis de chealla meall a chothú. Tá sé léirithe ag staidéir go n-uasghrádaíonn a chonair thábhachtach an leibhéal p120RasGAP dá éifeacht theiripeach trí phosphorylation homeobox pituitary 1 (PITX1) a chur chun cinn chun a léiriú agus a chobhsaíocht a mhéadú [16]. Mar sin féin, braitheann cibé an féidir apoptosis a tharlú go rathúil ar an méid gníomhaíochta cosán comharthaíochta. Tá Caspase-3 níos éadroma i ngníomh, rud a chuireann in aghaidh apoptosis agus a chothaíonn maireachtáil cille trí p120RasGAP a scoilteadh ina dhá chuid; gníomhaíonn a blúire N-críochfort an cosán PI3k/Akt, agus ní chuirfidh ach hipirghníomhaíocht caspase bás cille apoptotic chun cinn [17, 18].
I HCC, tá tionchar ag an lncRNA oncogenic HOXD-AS1 ar léiriú RGS3, a laghdaíonn leibhéil mRNA RGS3 agus a ghníomhaíonn cosán comharthaíochta MEK/ERK chun apoptosis a chosc [19]. Déanann HOXD-AS1 freisin léiriú ARHGAP11A (a RhoGAP) a rialú agus mar thoradh ar ionduchtú metastasis trí fónamh mar RNA endogenous iomaíoch (ceRNA) agus repressing miR19 [19]. Cosúil le HOXD-AS1, feidhmíonn an STARD13 (DLC2, a RhoGAP) 3'UTR mar ceRNA agus méadaítear léiriú fachtóir modhnaithe Bcl-2 (BMF) trí cheangal iomaíoch a dhéanamh le miR-125b in ailse chíche.
Idir an dá linn, d'fhéadfadh an STARD13 3'UTR idirghníomhaíocht BMF/Bcl-2 a chur chun cinn chun Bax agus cíteochrome c a scaoileadh chun conair intreach apoptóis [20] a ghníomhachtú. Bíonn tionchar díreach ag DLC1 agus DAB2IP ar an gcosán comhfhreagrach agus ar an spriocphróitéin chun apoptosis a spreagadh. Mar shampla, dírialaíonn DLC1 (a RhoGAP) slonn TNFAIP3/A20 agus uasrialaíonn sé an abairt BCL211/BIM agus caspase-3 chun bás cille a spreagadh trí chomharthaíocht NF-кB a dhíghníomhachtú in angiosarcoma [21]. Baineann éifeacht DAB2IP ar apoptosis a chur chun cinn le bealaí comharthaíochta iomadúla in ailse [22]. In ailse próstatach (PCa), tá ról déach ag DAB2IP maidir le tionchar a imirt ar apoptosis. Ar an gcéad dul síos, idirghníomhaíonn DAB2IP go díreach le STAT3 agus cuireann sé bac ar a fosfarylation (tyrosine 705 agus serine 727) agus trasghníomhú, rud a chuireann isteach ar léiriú cothromaithe géinte pro-apoptotic (Bax) agus géinte frith-apoptotic (marthanach, Bcl-2 agus Bcl -xL) agus apoptosis a chur chun cinn. Sa dara háit, gníomhaíonn DAB2IP cosáin intreacha, lena n-áirítear cur isteach ar acmhainneacht an membrane mitochondrial agus scaoileadh cytochrome c, Omi / HtrA2, agus Smac, ag gníomhachtú an easghluaiseachta caspase ar deireadh [23].
Is féidir le RACGAP1 metastasis agus forbairt ailse a chur chun cinn trí chosc a chur ar apoptosis. Feidhmíonn RACGAP1 ar phróitéiní beaga G de theaghlach Rho, ag spreagadh hidrealú GTP agus ag rialú CDC42 agus RAC1. Bíonn tionchar ag STAT3 agus seicheamh claochlaithe cille epithelial 2 (ECT2) ar shloinneadh agus ar chobhsaíocht RACGAP1. I HCC, is féidir le STAT3, fachtóir trascríobh RACGAP1, léiriú RACGAP1 a rialáil, agus ansin, laghdaíonn RACGAP1 an cosán comharthaíochta Hippo trí charnadh F-actin chun an comhghníomhaitheoir trascríobh próitéin yes-ghaolmhar (YAP) a ghníomhachtú. Le YAP, déantar tras-rialú an réigiúin tionscnóra tras-aistrithe nucleoporin (TPR). Is féidir le TPR ar a seal rialáil a dhéanamh ar fhosfarylation agus logánú RACGAP1 sa fhearsaid lárnach. Mar thoradh air sin, cuirtear bac ar apoptosis agus cuirtear fás cealla meall chun cinn [24]. Idirghníomhaíonn ECT2, an gníomhaire catalaíoch de mhalartú nucleotíde guanine ar GTPases beaga [25], le RacGAP1. In HCC, ar thaobh amháin, cuireann ECT2 cobhsaíocht próitéine RacGAP1 chun cinn, agus ar an láimh eile, cuireann RacGAP1 gníomhachtú RhoA trí mheán ECT agus meatastasis cille HCC chun cinn [26]. In ailse chíche basal-mhaith (BLBC), tá sé léirithe freisin go dteipeann ar chealla RACGAP1 i gcítokinesis agus go gcuirfí tús le apoptosis [27].
Cinnte, tá ról suntasach ag GAPanna freisin i galair eile a bhaineann le apoptosis seachas ailse. Ardóidh apoptosis neamhthráthúil agus míchuí an ráta tarlaithe de ghalar cardashoithíoch. Tagann seachtó faoin gcéad de na hothair anchuma ribeach-arteriovenous anabaí i láthair le sócháin neamhghníomhaithe sa ghéin RASA1. Is dóichí, bunaithe ar fheidhm an blúire N-críochfort scoilte de RASA1 i idirghabháil frith-apoptosis, mar thoradh ar easnamh RASA1 apoptosis de chealla endothelial soitheach lymphatic (LV), rud a chuireann tús le foirmiú lagaithe comhlaí LV [28].
Ina theannta sin, ní hamháin go gcomhordaíonn RGS5 gníomhaíocht próitéiní proapoptotic, próitéiní antiapoptotic, agus caspase-3 ach freisin cuireann sé bac ar bhealaí comharthaíochta JNK1/2 agus p38 chun bac a chur ar apoptosis cardiomyocytes, atá ann in ischemia-reperfusion miócairdiach [29 ]. Baineann apoptosis neamhriachtanach freisin le galair néareolaíocha agus neuropathy snáthoptaice. Tugann taighdeoirí le fios gur féidir le ró-expression DAB2IP, a bhfuil an t-ainm nua apoptosis comhartha-rialaithe kinase 1-próitéin idirghníomhach-1, forbairt galar Alzheimer a chur chun cinn trí idirghabháil -amyloid-spreagtha apoptosis de chealla endothelial cheirbreach, agus cuirfidh overexpression TBC1D17 bás cille reitineach chun cinn chun neuropathy snáthoptaice a bhaint amach [30, 31].
Go hachomair, idirghníomhaíonn na GAPanna thuasluaite lena spriocphróitéin nó lena gconairí comharthaíochta chun cosáin chomharthaíochta apoptotic a ghníomhachtú nó a chosc agus tionchar a imirt ar apoptosis, rud a chuireann isteach ar fhorbairt an ghalair. Go leanúnach, thug scoláirí aird láidir ar mheicníochtaí agus ar straitéisí teiripeacha tumaí. Anseo, tugaimid isteach roinnt GPAanna a dhéanann difear do apoptosis chun an próiseas paiteolaíoch a nochtadh agus éifeacht theiripeach tumaí a fheabhsú. Ar ndóigh, léiríonn taighde GAP freisin meicníochtaí speisialta próisis phaiteolaíocha eile chun tuiscint níos fearr a thabhairt dúinn ar an dearadh agus chun cabhrú linn cóireáil éifeachtach a fhorbairt do spriocanna speisialta.
RCD neamhapoptotic
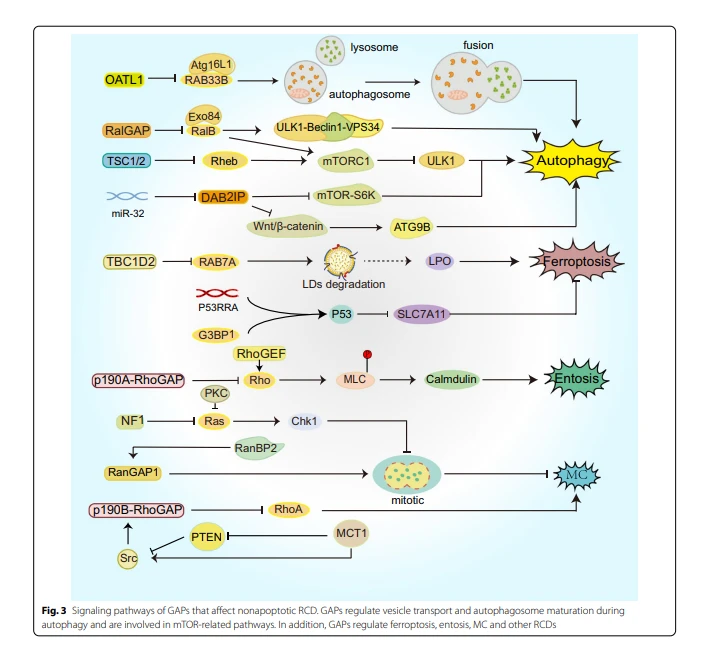
Clúdaíonn an chuid seo ní hamháin bás cille atá ag brath ar autophagy chun an comhlachas le GAPanna a mhíniú ach freisin foirmeacha núíosacha báis cille, mar shampla ferroptosis, piroptóis, agus cineálacha neamhfhoirmiúla eile (Fíor 3).
Bás cille atá ag brath ar uathphagy
Chun ár homeostasis fisiceach agus ár sláinte a chothabháil, is gá autophagy a ghníomhachtú chun deireadh a chur le comhpháirteanna iomarcacha agus díobhálacha na cille. Is próiseas tábhachtach, caomhnaithe agus gnáthcheallach é autophagy a roinntear i roinnt céimeanna i gcónaí: ionduchtú fagafór, foirmiú autophagosomes agus autolysosomes, agus díghrádú agus athshruthú ábhar lonrúil. Is iad na príomh-shaintréithe struchtúir membrane speisialta, lena n-áirítear phagophores, autophagosomes, agus autolysosomes. Meastar gur meicníocht marthanais cille é autophagy, ach nuair a dhéantar róghníomhaíocht ar uathphagy thar acmhainn na cille, bíonn bás cille mar thoradh air, ar a dtugtar bás cille spleách ar autophagy (ADCD). Éilíonn sainaithint ADCD gnéithe de ráta méadaithe gníomhaíochta autophagic agus eisiamh bás cille mar gheall ar fhoirmeacha eile, agus is féidir é a mhodhnú trí chosc géiniteach agus / nó cógaseolaíochta ar fhachtóirí autophagy [32].
Mar sin féin, tá coincheap ADCD an-chonspóideach fós. Ar thaobh amháin, toisc go bhfuil crosstalk idir autophagy agus RCDanna eile, mar apoptosis, tá sé deacair ADCD a shainiú mar phróiseas bás cille neamhspleách ach amháin trí mharcóirí móilíneacha agus moirfeolaíocha ábhartha, agus ar an láimh eile, tairseach chun aicmiú marfach. agus tá sé deacair autophagy nonlethal a chinneadh [33, 34]. D’fhéadfadh ról an autophagy i siadaí a bheith dhá thaobh. Cé go gcuireann caillteanas autophagy chun cinn siadaí i múnlaí luch, léiríonn níos mó fianaise gur féidir le autophagy freagraí athlastacha a bhaineann go sonrach le meall a bhaint agus cuidiú le gníomhaíochtaí meitibileach cille meall i micri-thimpeallacht atá teoranta ó thaobh cothaitheach, ag cur fás meall chun cinn [35, 36]. Tá sé léirithe gur féidir le roinnt drugaí frith-ailse, mar shampla resveratrol agus trioxide arsanaic, ADCD a aslú [37-39], agus ina theannta sin, tarlaíonn ADCD i gcealla oncogenic Ras-in iúl in éagmais géinte cotransformed eile [40], ach a Tá an ról atá ag siadaí éagsúla fós le fiosrú. Mar sin, ní thugtar ach réamhrá teoranta ar ról na GAPanna san uathphagaíocht anseo.
Is marcóirí moirfeolaíocha na n-uathphagaigí iad uathphagosomes, agus tá próitéiní a bhaineann le hútarphagaig (ATG) ríthábhachtach maidir le foirmiú uathphagosóim agus is marcóirí móilíneacha uathphagaigí iad. Is féidir le RAB GTPases iompar vesicles intracellular a rialú [41] agus aibiú autophagosome a ainmniú [42]. Tá feidhmeanna cinnte ag thart ar 10 próitéin RAB in autophagy [43]. Mar sin, tá baint ag RABGAPanna, lena n-áirítear TBC (TRE2-BUB2-CDC16), ina bhfuil RABGAPanna san fhearann, le húathphagaireacht freisin. Bíonn tionchar ag RAB33B ar fhoirmiú uathphagosomes trí choimpléasc Atg12-Atg5-Atg16L1 a earcú ina fhagaicítí, agus is é Atg16L1 an próitéin cheangailteach de RAB33B [44].
Léirigh staidéar amháin gur GAP é OATL1 ag gníomhú ar RAB33B, agus is féidir leis an ró-bhrú moill a chur ar aibiú autophagosome trí rialú a dhéanamh ar an gcomhleá idir autophagosomes agus lysosomes [45]. Tá RalA/B (RAS cosúil le A/B), ball de theaghlach Ras GTPase, ina phríomhrialaitheoir ar iompar vesicle freisin [46]. Sa mhúnla cille mamaigh, aslaíonn RalB agus a éifeachtóir próitéin Exo84 le chéile ULK1-Beclin1-Cóimeáil VPS34, rud atá ag teastáil le haghaidh foirmiú uathphagosome. Faoi choinníollacha turgnamhacha gan teorannú cothaitheach, féadfaidh laghdú ar RalGAP RalB a ghníomhachtú agus méadú ar autophagy a spreagadh [47]. I dturgnamh eile ag baint úsáide as Drosophila mar mhúnla, fuair taighdeoirí go rialaíonn Ral GTPase autophagy i gcomhthéacs PCD [48], a d'fhéadfaí a mheas mar ADCD.
Comhtháthaíonn an sprioc mheicníoch de rapamycin (mTOR) fachtóirí fáis agus comharthaí cothaitheach chun bac a chur ar uathphagy. Cuireann mTORC1, atá ina choimpléasc comharthaíochta le mTOR mar phríomh-chomhpháirt, fosfarú ULK1 (unc-51-cosúil le kinase 1) chun cinn i láthair dóthain cothaithigh [49]. Faoi rialú kinases comharthaíochta AKT agus AMPK, feidhmíonn coimpléasc scléaróis tuberous 1/2 (TSC1/2) mar GAP of Rheb (an homolog Ras saibhrithe san inchinn) chun bac a chur ar fhoirmiú Rheb atá faoi cheangal GTP agus glacann sé páirt sa rialachán. den chonair chomharthaíochta Rheb-mTORC1-ULK1 chun uathphagaireacht a chur chun cinn [49–51]. Tá easnamh Tsc1/2 freagrach as forbairt coimpléasc scléaróis tiúbrach (TSC), neamhord ceannasach autosomal a thugann réamhshuíomh ar othair le forbairt siadaí na gcóras orgán iolrach [52]. Mar sin, d’fhéadfadh carnadh foshraitheanna autophagic, lena n-áirítear próitéiní neamhghnácha agus organelles, laistigh den chill a bheith mar thoradh ar autophagy lochtach i TSC, tumorigenesis a chur chun cinn. Tá sé léirithe ag staidéir freisin go spreagann scriosadh RalGAP méadú ar ghníomhaíocht mTORC1, rud a fhágann go laghdaítear autophagy.

Idir an dá linn, in ailse pancreatach, cuireann RalGAP faoi chois ionradh cille meall trí chomharthaíocht mTORC1 [53]. Méadaíonn autophagy friotaíocht na gcealla meall chuig ceimiteiripe agus radaiteiripe. Is dóichí go gcothóidh Temozoloimíd (TMZ) le haghaidh cóireáil glioblastoma (GBM) uathphagaí agus d’fhéadfadh cealla siadaí a bheith frithsheasmhach don druga. Fuarthas amach go rialaíonn DAB2IP léiriú ATG9B go diúltach tríd an gcosán comharthaíochta Wnt/ -catenin, rud a chuir cosc ar uathphagy TMZ-spreagtha agus ag méadú íogaireacht drugaí i gcealla GBM [54]. Ina theannta sin, tá sé léirithe go bhfuil DAB2IP ina rialtóir diúltach ar fhriotaíocht radaíochta a bhaineann le autophagy i PCa. Mar rialtóir in aghaidh an tsrutha de DAB2IP, déanann miR-32 leibhéal próitéine DAB2IP a íosrialáil trí dhíriú ar a 3'-UTR agus a aistriú a chosc [55]. Ina dhiaidh sin, cuirtear an cosán mTOR-S6K anuas i ngníomh, ach cuirtear feabhas ar ghníomhaíocht autophagy, rud a d'fhéadfadh a bheith mar thoradh ar chosc ar aiseolas diúltach ar Akt [56], ag cur feabhas ar fhriotaíocht radaíochta cealla PCa ar deireadh [55, 57].
Bíonn tionchar ag roinnt GAPanna ar an néarchóras trí autophagy a rialú. Rialaíonn SIPA1L2, próitéin a ghníomhaíonn Rap GTPase, an próiseas saortha néar-tharchuradóirí, atá nasctha le comharthaíocht TrkB/Rap1 agus amfasóim atá mar orgánail chomhleá de endosomes déanach TrkB le autophagosomes [58], agus cinn eile, lena n-áirítear TBC1D5 agus TBC1D15, a bhaineann le galar néaróin mótair, agus is cúis leis na GAPanna seo an próiseas uathdhíghrádaithe neamhord agus comhiomlánú próitéiní tocsaineacha [59-63]. Déanann SGSM3/RABGAP5 agus TBC1D10A araon na GTPasanna comhfhreagracha a dhíghníomhachtú chun deireadh a chur le huafásacht agus bíonn éifeachtaí acu ar an gcóras imdhíonachta nuair a chuireann uathphagaí deireadh le pataiginí agus nuair a dhéanann sé damáiste d'orgánelles na gceall [64, 65]. D’fhéadfadh galair uathshómacha ilchineálacha géiniteacha a bheith mar thoradh ar easpa GAPanna. Mar shampla, is féidir le scriosadh próitéin TBC1D20 ráta timpiste Warburg Microsyndrome 4 a mhéadú, ar neamhord autosomal é agus a bhfuil feidhmeanna neamhghnácha súl, inchinne agus giniúna aige [66]. Is meicníocht intreach é autophagy freisin chun meitibileacht a chothabháil agus chun cothaithigh a athchúrsáil le linn ocras nó strus. Ceanglaíonn TBC1D5 agus forláimhsíonn sé LC3 móide urranna uathphagacha agus méadaíonn sé slonn iompróir glúcóis GLUT1/Slc2a1 ar an scannán plasma, rud a éascaíonn glacadh glúcóis agus flosc glycolytic [67].
Mar fhocal scoir, déanann an chuid is mó de na GAPanna an ghníomhaíocht GTPase comhfhreagrach a íosrialáil chun uathphagaíocht a rialáil go díreach chun tionchar a imirt ar ár bhfeidhmeanna fisiceacha, ach is beag duine a fheidhmíonn mar éifeachtóirí chun uathphagaíocht a rialáil go hindíreach chun an sprioc sin a bhaint amach. Tá dlúthbhaint ag autophagy le hoiméastáis fhisiceach agus sláinte. Go suntasach, bíonn tionchar ag GAPanna ar phróiseas na n-uathphagy. Ar an drochuair, tá go leor réimsí neamhthaighde ag ADCD féin, agus mar thoradh air sin, is beag staidéar atá ar ADCD agus GAPanna. Ní féidir linn ach ról féideartha na GAPanna in ADCD a bhaint as an gceangal idir uathphagaíocht agus GAPanna. Dá bhrí sin, tá gá le tuilleadh staidéir chun tuiscint níos fearr a thabhairt dúinn ar conas a rialaíonn GAPanna ADCD i gcásanna fiseolaíocha agus paiteolaíocha, tuiscint cheart a fháil ar fhorbairt phaiteolaíoch, agus teacht ar spriocanna teiripeacha.
Ferroptosis
Is RCD ocsaídiúcháin úrscéal é Ferroptosis ina bhfuil na hiarmhairtí carntha ag spleáchas iarann marfach ar hidroperocsaídí lipid [68]. Cuireann a bhreathnóireacht eolaíoch tús leis an turgnamh ar bhás cille roghnach elastin-spreagtha in 2003, agus ceapadh an téarma "ferroptosis" in 2012 [69]. Ina dhiaidh sin, ghin scoláirí borradh i dtaighde ferroptosis. Is í an ghné uathúil dá mhoirfeolaíocht athruithe mitochondrial lena n-áirítear méid beag, athrú ar dhlúis membrane, laghdú nó vanishing crista mitochondrial, agus réabfaidh na seicní seachtracha [70]. Baineann Ferroptosis le galair éagsúla, lena n-áirítear gortú duáin géarmhíochaine, ailse, agus galar cardashoithíoch. Tá cuid den ionduchtú ferroptosis ag brath ar RAS [71]. I gcealla ailse mutant Ras, cuireann bac ar chonair RAS-RAF-MEK bac ar ferroptosis a tharlódh le elastin, ar druga antitumor é a chuireann bás cille chun cinn [72]. Mar sin féin, is beag atá ar eolas faoin gceangal idir GAPanna agus fearótóis.
Tá cur síos déanta ar líon mór marcóirí agus cosáin mhóilíneacha le haghaidh autophagy mar phróisis fhéideartha de ferroptosis [9, 73]. D'fhéadfadh GTPasanna agus GAPanna a bhfuil ról acu in uathphagaíocht a bheith ina rialtóirí ar fhireaptóis freisin. Tá baint ag RAB7A le díghrádú autophagy-spreagtha ar bhraoiníní lipid (LDs), agus déanann an sárocsaídiú lipid a ghabhann leis ferroptosis [74]. Dá réir sin, d'fhéadfadh TBC1D2, mar rialtóir diúltach RAB7A, ferroptosis a rialáil ar bhealach atá ag brath ar RAB7A [75]. Tá baint ag G3BP1 (Ras-GTPase-gníomhachtú próitéin-ceangailteach próitéin 1) le coigeartú cosán comharthaíochta Ras. Tá an próiseas báis cille spreagtha é nasctha leis an neamhchódú fada RNA P53RRA, atá á rialú ag LSH agus p53. Le linn an phróisis sin, idirghníomhaíonn núicléatídí 1 agus 871 de P53RRA go díreach leis an bhfearann idirghníomhaíochta móitíf aitheantais RNA de G3BP1 (aa 177-466), a fhoirmíonn an coimpléasc P53RRA-G3BP1. Sa chíteaplasma, díláithríonn an idirghníomhaíocht P53RRA-G3BP1 p53 ó choimpléasc G3BP1, rud a fhágann go ndéantar aistriú p53 trí p53 a athdháileadh ón gcíteaplasma go dtí an núicléas, a ghníomhaíonn cosán comharthaíochta p53 agus a mbíonn tionchar aige ar léiriú roinnt géinte meitibileach, mar shampla TIGAR. agus SLC7A11, ar deireadh thiar ina chúis le gabháil timthriall cille, as a dtagann apoptosis agus ferroptosis [76].
Piroptóis
Is cineál RCD athlastach é pyroptosis atá ina mheicníocht imdhíonachta dúchasach chun seasamh in aghaidh ionradh pataigin agus homeostasis fisiceach a chothabháil [77]. Is cúis le gníomhachtú Caspase-1/4/5/11 roinnt inflammasomes, a ardaíonn an ráta scoilteachta de gasdermin D agus secrete cítocíní athlastacha aibí, mar interleukin-18 agus interleukin-1 [78 ]. Is iad na gnéithe atá aige ná ilroinnt DNA, at cille, agus boilgeoga a réabfaidh an scannán plasma sa deireadh.
Léirítear an nasc idir pioptóis agus GAPanna sa bhás cille a tharlódh ó mhiocrorgánaigh áirithe. Is cineál de phróitéin sheachtrach Yersinia (Yops) é YopE agus féadann sé gníomhú mar GAP óstach Rho GTPase trí hidrealú a dhéanamh ar Rho GTPase faoi cheangal GTP ar bhealach neamhchomhfhiúsach i Yersinia. Le linn ionfhabhtú Yersinia agus ionduchtú bás cille, tá comhoibrí eile ag YopE, YopT, próitéató cistéin a dhíscaoileann go comhfhiúsach an C-críochfort Rho GTPase, rud a fhágann díthiomsú agus díghníomhú Rho GTPase. Cé go bhfuil YopE agus YopT difriúil go bunúsach ó dhíghníomhú Rho GTPase, is tocsainí Rhomodifying iad araon a mbíonn tionchar acu ar fhiseolaíocht na gceall óstach agus a imíonn freagraí imdhíonachta. Cothaítear an próiseas seo go díreach ar bhealach a dhífhosfar na suíomhanna gníomhacha Ser205 agus Ser241 de pirín agus a fhoirmíonn pirín inflammasome, rud a fhágann go dtiocfaidh pyroptosis ar deireadh [79].
Bás cille entosis
I 2007, rinne na taighdeoirí cur síos ar entosis próiseas bás cille neamh-poptotic chun cuntas a thabhairt ar an bhfeiniméan itheacháin cille a breathnaíodh idir cealla meall [80, 81]. Nuair a bhíonn cealla beo á gcaitheamh ag na cineálacha cealla céanna nó difriúla, tarlaíonn struchtúr "cill laistigh de chill", rud a fhágann bás cealla inmheánaithe (cealla enotic). Níl tréithe moirfeolaíocha agus móilíneacha apoptosis ag cealla entotic atá ag fáil bháis ach léiríonn siad spleáchas uathphagy, le comhleá autophagy lysosome agus membrane bhfolús ag brath ar phróitéin a spreagann entosis [82, 83].
Is príomhphróisis in entosis iad greamaitheacht cille agus atheagrú cítea-chnámharlaigh agus ní féidir iad a shainmhíniú i gcomharthaí epithelial cadherin agus Rho-ROCK [80]. Cuireann earcú RhoGAP p190A ag acomhail chill-chill bac ar ghníomhaíocht chonair an Rho, rud a fhágann go laghdaítear fosfarú slabhra solais myosin, a laghdaíonn crapadh actomyosin agus a shochtann leibhéil chalmaodulin. Mar gheall ar dháileadh polaraithe p190A RhoGAP, tá crapadh actin ag deireadh distal greamaitheacht cille i bhfad níos airde ná sin ag an suíomh greamaitheachta cille [84]. Ina theannta sin, tá RhoGEF gníomhachtaithe ag deireadh distal greamaitheacht cille [85]. Dá bhrí sin, gníomhaíonn RhoGAP agus RhoGEF ar leithligh do Rho ach go sineirgisteacha le haghaidh ionduchtú ketosis.

Tubaiste mitotic
Is éard atá i dtubaiste miotóiseach (MC) ná cineál báis cille miotatach neamhghnácha atá ina mheicníocht frith-ailse éifeachtach agus teiripe [86] freisin. Is athruithe uathúla núicléacha iad a saintréithe moirfeolaíocha a léiríonn go hiondúil ilnúicléas agus/nó micrinúicléas [87]. Le bheith beacht, ní cineál RCD é MC toisc nach gá go n-eascraíonn MC, cosúil le autophagy, bás cille, agus dá bhrí sin, molann an Coiste Ainmníochta ar Bhás Cille 2018 úsáid a bhaint as an téarma bás mitotic mar ainm an chineál seo báis [10 ]. Thairis sin, léirigh staidéir gurb é cinniúint deiridh an chuid is mó de chealla MC ná apoptosis intreach [10, 88], le difríochtaí agus naisc idir an dá cheann.
Tá cineálacha crann GAPanna nasctha le miotóis aberrant: RasGAP NF1, p190RhoGAP, agus RanGAP. Is féidir le sócháin in NF1 cosáin chomharthaíochta iartheachtacha a bhaineann le RAS a ghníomhachtú. Sa chás seo, tá gá le comhordú ar bhealaí comharthaíochta eile, ar nós cosáin a bhaineann le PKC, chun suaitheadh ceallacha róghníomhaithe RAS a rialáil agus is gá chun maireachtáil cille a chinntiú. Faoi choinníollacha easnamhacha Nf1-, is dóichí go gcomhoibríonn cosc próitéin inghineach kinase C (PKC) leis an cosán Akt (ceann d’éifeachtóirí aberrant Ras) chun Chk1 a ghníomhachtú, ag síneadh gabhála miotóiseach agus ina dhiaidh sin ina chúis le apoptosis trí MC. [89]. Cuireann ró-léiriú cóipeanna iolracha i malignancy T-chealla 1 (MCT-1) isteach ar chur i láthair na géine PTEN agus bíonn tionchar diúltach aige ar chobhsaíocht agus ar ghníomhaíocht fheidhmiúil a próitéiní, ag gníomhachtú comharthaíochta fosphoinositide 3 kinase/AKT. Ina theannta sin, rinne MCT-1 p190RhoGAP a íosrialáil agus slonn p190B a athrialú, a cheanglaíonn Src, a idirghníomhaíonn le MCT-1, agus a ghníomhaíonn comharthaíocht Src/p190B. Sa deireadh, cuireann cur i láthair méadaithe MCT-1 agus an PTEN coiscthe go sineirgíoch leis an gcosán Src/p190B, rud a fhágann dúlagar ar ghníomhaíocht RhoA agus a fheabhsaíonn ráta tarlaithe MC [90].
I gcodarsnacht leis an gcur síos ar na GAPanna thuas, chomh maith le logánú kinetochore agus fearsaid RanGAP1 faoi thionchar allmhairithe 1, atá ina rialtóir a bhaineann le veicteoir na bpríomhnúicléas idirphase agus dul chun cinn miotóiseach, tá baint ag sumoylation RanGAP1 le importin freisin. 1 agus léiríonn sé comhghaol dearfach. Is é an mheicníocht is dóichí go n-idirghníomhaíonn RanBP2 go díreach le N-críochfort importin 1, sequesters RanBP2 endogenous, laghdaigh sé agus importin 1, agus idirleata an dá, as a dtiocfaidh foirmiú fearsaid neamhghnácha agus ailíniú crómasóim lagaithe, rud a fhágann bás cille sa deireadh [91] . Go hachomair, d'fhéadfadh rialáil neamhghnácha ar ghníomhaíocht próitéin GTPase comhfhreagrach ag GAPanna cur isteach ar an ngnáth-cascáid comhartha agus ar deireadh ráta na dtimpistí MC a mhéadú.
Modhanna
Is foirm uathúil de RCD é Methuosis, agus is é a shaintréith speisialta ná vacuolization, carnadh vesicles (scannán singil agus ó mhacripinosomes, idirdhealú a dhéanamh ar struchtúr seicní dúbailte na n-uathphagosomes), agus sa deireadh réabfaidh membrane plasma [92]. Tá dlúthbhaint ag Methuosis le cosán comharthaíochta Ras (gníomhachtú leanúnach), arb é is sainairíonna é GBM agus carcinoma gastrach [93].
Feidhmíonn GIT1 mar GAP chun Arf6 a dhíghníomhachtú trí GTP a hidrealú chun tionchar a imirt ar mhodhanna. Sa phróiseas sin, gníomhaíonn H-Ras hipirghníomhaí an Rac1 GEF, ag méadú an méid Rac1-GTP. Micropinocytosis feabhsaithe ag gníomhachtú Rac1 agus endocytosis clathrin-neamhspleách (CIE) a fháil ar roinnt gnéithe de endosomes déanach (Rab7 agus LAMP1). Idir an dá linn, tá meicníocht aiseolais ann ina gcuireann Rac1 hipirghníomhach ar chumas Rac1-GTP idirghníomhú go díreach le GIT1, ag laghdú gníomhaíocht Arf6, ag cur isteach ar athchúrsáil CIEanna, agus ag teip ar chomhleá le líseasóim. Mar fhocal scoir, bíonn carnadh CIE mar thoradh ar na hiarmhairtí seo, agus cumascann na veinsíní endosomal déanacha, rud a chruthaíonn folúis cíteaplasmacha níos mó líonta le sreabhán, a réabfaidh an membrane plasma sa deireadh agus a fhágann bás cille [94, 95]. Mar sin féin, tá an toradh thuas contrártha le maoiniú Shliom agus comhghleacaithe go gcuireann gníomhaíocht Arf6 (Q67 L) foirmiú vacuole chun cinn i gcealla a chuireann in iúl H-Ras (G12V) [96]. Is é an míniú is oiriúnaí don fheiniméan seo ná go mbíonn tionchar acu ar na folúis a thagann chun cinn
Rialaíonn GAPanna díolúine siadaí
Tá dlúthbhaint ag RCD agus díolúine
Ceapadh ar dtús gur imeacht imdhíonachta-tolerogenic é RCD, go háirithe apoptosis [97]. Mar sin féin, tá fianaise níos déanaí agus tabhairt isteach an choincheapa maidir le bás cille imdhíon-ghineach (ICD) tar éis ról na gníomhaíochta imdhíonachta i RCD a bhunú de réir a chéile. Ní modh bás neamhspleách é ICD, agus tagraíonn sé do chineál RCD a bhfuil láithreacht díolúine oiriúnaitheach á thiomáint ag gníomhachtú limficítí T citotocsaineacha (CTLanna) mar fhreagra ar bhás cille de bharr strus [97, 98]. Is próiseas casta é forbairt ICD ina bhfuil antaiginí ann nach bhfuil clúdaithe ag lamháltas lárnach i gcealla marbha agus nochtadh agus scaoileadh patrúin mhóilíneacha a bhaineann le damáiste (DAMPanna) ina gcomhpháirteanna tábhachtacha, dá ngairtear antigenicity agus aidiúvacht, faoi seach [98]. ]. Cuireann DAMPanna earcú agus aibiú cealla a chuireann antaigin i láthair (APCanna) chun cinn, rud a spreagann freagairt imdhíonachta atá ag brath ar CTL [99]. D'fhéadfadh roinnt gníomhairí ceimiteiripeacha traidisiúnta, víris oncolytic, gníomhairí frith-ailse spriocdhírithe, módúlachtaí sonracha radaiteiripe, agus fachtóirí eile a bheith ina n-ionduchtóirí de ICD [100, 101].
Bunaithe ar an gcinneadh seo, i 2013, mhol taighdeoirí go bhféadfadh éifeachtaí frith-tumóra éifeachtacha a bheith mar thoradh ar chomhcheangail d’ionduchtóirí ICD le himdhíon-mhodóirí eile [99], agus dheimhnigh staidéir ina dhiaidh sin go bhfuil antasubstaintí monaclónacha ag díriú ar sheicphointí imdhíonachta a bhfuil bac clasaiceach orthu, mar shampla T-limficítí citotocsaineacha. is comhoibrithe maith iad antigen 4 (CTLA-4), bás cille ríomhchláraithe-1 (PD-1) agus a ligand comhfhreagrach PD-L1 don ICD [102–104]. Le déanaí, léirigh imdhíonteiripe ailse in éineacht le nanaitheicneolaíocht chun ICD a aslú ionchais nua [105, 106]. Ar ndóigh, ní RCDanna eile deireadh na cille ach d'fhéadfadh a bheith ina thús freagra imdhíonachta nó fiú ICD [107]. Thairis sin, tá na RCDanna seo ag gabháil do dhíolúine antitumor [108, 109]. Mar shampla, déanann cealla T agus ferroptosis idirghabháil ar a chéile i tumaí. Feabhsaítear sárocsaídiú lipid de chealla meall CD8 móide T immunotherapy-gníomhachtaithe i gcealla meall, rud a chuir le héifeachtúlacht antitumor imdhíonteiripe le ferroptosis méadaithe [110]. Is leor an fhianaise seo chun a léiriú go bhfuil RCD nasctha go dlúth le gníomhaíocht imdhíonachta agus imdhíonteiripe.

Cuireann GAPanna leis an micrithimpeallacht imdhíonachta
Bíonn tionchar ag GAPanna (Fíor 4A) ar fhoirmiú agus ar fheidhm basal na gcealla imdhíonachta iolracha. Is iad cealla T príomhghné na himdhíonachta antitumor. Déantar thymocytes dúbailte-dearfach neamhaibí (DP) a dhifreáil go páirteach i gcealla CD4 móide nó CD8 móide aon-dearfach (SP) T tar éis roghnú dearfach, ach déantar apoptosis ar na cealla DP T eile. Tá staidéar maith déanta ar an meicníocht trína rialaíonn cosán Ras-MAPK an próiseas seo [111, 112].
I thymus easnamhach RASA, tá claonadh méadaithe i gcealla DP i leith apoptosis, ach tugann an cóimheas méadaithe CD4 SP go DP le fios go gcuireann scriosadh RASA1 roghnú dearfach chun cinn agus go bhféadfadh baint a bheith aige le gníomhachtú cosán comharthaíochta Ras-MAPK [113]. Ina theannta sin, i bhfianaise éifeacht proapoptotic DAB2IP, déanann an casta CCR4-NOT íosrialáil DAB2IP chun páirt a ghlacadh i roghnú dearfach thymocytes [114]. Go suimiúil, léirigh staidéar eile go gcuireann NF1 rogha dearfach de thymocytes chun cinn i lucha baineann HY TCR Tg, ach níl an meicníocht soiléir [115]. Sampla eile de rialachán cille T ná go gcomhordaíonn ARHGAP19 an t-athmhúnlú citoskeletal a theastaíonn le haghaidh rannán lymphocyte T agus go rialaíonn sé deighilt crómasóim trí RhoA a rialáil [116]. D'fhéadfadh ARHGAP45 RHO a rialáil chun athruithe a dhéanamh ar cítosnámharlach na gcealla naive T, a ndífhoirmiú agus a n-imirce chuig nóid linf (LNanna) a mhéadú, agus síolú thymic de ghinteoirí cille T a chur chun cinn [117].
Ina theannta sin, tá gá le Rab35 agus a GAP EPI64C (TBC1D10C) i bhfoirmiú synapses imdhíoneolaíocha (ISs), atá mar chuid den idirghníomhaíocht T cell-APC [118]. Tá ról lárnach ag macrophages le sruth ón bhfreagra imdhíonachta trí chealla marbha a shlogadh. Tá staidéir roimhe seo tréithrithe ag baill Rho GTPase Rac1 agus Cdc42 mar lasca móilíneacha a rialaíonn fíochán cytoskeleton actin chun phagocytosis receptor-mediated Fc a rialáil [119, 120]. Sh3BP1, ArhGAP12, agus ArhGAP25 díghníomhaithe go comhoibritheach Rac agus Cdc42 in am agus spás, rud a chuir deireadh le fagaicíotóis macrophages go cáithníní móra cosúil le cealla apoptotic [121]. Tá baint ag polarú macrophage, motility, agus airíonna leathadh cille le rialáil idirghabhála RASA ar thrasuíomh p190RhoGAP [122]. Taispeánadh go raibh scriosadh RhoGAP myosin Myo9b eile i macrophages mar thoradh ar mhoirfeolaíocht cille athraithe agus cumas imirce lag [123]. Tá ról an teaghlaigh RhoGAP i neutrophils níos fairsinge, go príomha a bhaineann le hathruithe cruth neutrophil, greamaitheacht, chemotaxis, agus fagaicíotóis, arna athbhreithniú ag Roland Csépányi-Kömi et al. [124].
Le rannpháirtíocht na micri-thimpeallachta meall, is féidir le cealla meall éalú ó fhaireachas an chórais imdhíonachta agus mar sin maireachtáil ionsaithe imdhíonachta le linn an phróisis forbartha. Is sampla maith é NF1, ionchódú neurofibromin, chun ról na GAPanna i micri-thimpeallacht imdhíonachta meall a léiriú (Fíor 4 B). Is próitéin a ghníomhachtú GTPase é Neurofibromin a íosrialaíonn gníomhaíocht RAS, agus mar sin, is féidir le sócháin i NF1 cosáin chomharthaíochta iartheachtacha a bhaineann le RAS a ghníomhachtú. Is neamhord géiniteach an néarchórais é neurofibromatosis cineál 1 (NF1) de bharr caillteanas gníomhaíochta na GAPanna próitéine neurofibromin [125]. Tá cealla imdhíonachta cosúil le cealla crann athlastacha insíothlaithe ina chomhpháirt de NF1, agus tá sócháin an ghéine NF1 i gcealla imdhíonachta riachtanach don ghalar seo freisin [126]. Dhear taighdeoirí NF1fox/−; Krox20- Creacha lucha le cealla NF1 -/ - Schwann agus cealla NF1 móide / - crann agus fuarthas amach gur fhorbair lucha le iomadú cille Schwann, chomh maith le insíothlú crann cille ollmhór, neurofibromas plexiform i gcomparáid le lucha rialaithe. Léiríonn an toradh seo an bhfíric go gcruthaíonn an haploinsufficiency of NF1 crannchealla microenvironment imdhíonachta NF1 móide / - atá i bhfabhar siadaí [127].
Ina theannta sin, cuireann cealla NF1 - / - Schwann le himirce crann-chill haploinsufficiency Nf1 trí fhachtóir gascheall (SCF) agus dígranulation trí ghníomhachtú c-kit-mediated an chonair PIK-3 [128-130]. I gcomparáid le daoine gnáth, tá othair NF1 seans maith le tumaí an lárchórais néaróg a fhorbairt. I glioma íseal-ghrád (LGG), d'aimsigh taighdeoirí príomh-ais neuroimmune, rud a thugann le tuiscint go dtáirgeann néaróin mutant NF1 midkine chun cealla T a aslú chun microglia a ghníomhachtú chun CCL5 a tháirgeadh, fachtóir a chuireann fás LGG chun cinn [131]. Fuarthas torthaí comhchosúla i GBM.
Léirigh staidéar le déanaí go bhféadfadh samhlacha meall le codeletion de Nf1 agus Pten agus overexpression de EGFRVIII imréiteach imdhíonachta agus leibhéal ard den microenvironment imdhíon-imdhíonachta éalú, agus ba é caillteanas Nf1 an príomh-imeacht [132]. Is díol spéise é, cé go bhfuil sóchán neamhiomlán na n-ailéilí NF1 ina thiománaí tumaí, tá contrártha ag roinnt taighdeoirí sa mhéid is go bhféadfadh easpa NF1 i gcealla T gníomhaíocht cille T a mhéadú chun feabhas a chur ar mheicníocht monatóireachta imdhíonachta fisiceach an meall agus bac a chur ar imirce urchóideach. Ag teacht leis an gcinneadh seo, déanann feiniméan cliniciúil na n-othar NF1 ina bhfuil an chuid is mó de na siadaí a bhaineann le NF1 athmhúnlú neamhurchóideach ár n-aitheantas ar shócháin géine NF1 [133].
Ina theannta sin, léirigh staidéir go rialaíonn an próitéin Ras-mhaith 1 próitéine (Rasal1) cosán P21Ras-ERK i gcealla T go diúltach, rud a chuireann bac ar ghníomhachtú cealla T chun imdhíonacht antitumor cealla T a laghdú, agus taispeánadh RASAL1 knockdown. chun feabhas a chur ar ghníomhaíocht antitumor cealla T i meileanóma B16 agus linfoma EL[134]. Mar an GAP de phróitéiní G, tá baint ag an teaghlach RGS le gníomhaíocht imdhíonachta a rialáil ar go leor bealaí agus tá an cumas aige imdhíonteiripe spriocdhírithe [135]. Léirigh staidéir le déanaí go gcuireann RGS1 bac ar iompar cealla T1 agus CTLanna chuig siadaí, ag éascú foirmiú 'siadaí fuar' in ailse chíche agus ag lagú díolúine antitumor [136]. Idir an dá linn, léirigh turgnaimh luch go bhféadfadh aistriú CTLanna meall-shonracha le cnagadh RGS1 i gcomhar le PD-L1 a bheith ina straitéis imdhíonteiripeach geallta d'ailse chíche [136].
Conclúidí agus peirspictíochtaí
Tá méadú tagtha le blianta beaga anuas ar thaighde ar GAPanna i ngalar, go háirithe ailse. D’fhéadfadh go mbeadh tionchar ag roinnt GAPanna ar iomadú cille ailse, imirce, frithsheasmhacht in aghaidh drugaí, agus claochlú urchóideach agus d’fhéadfadh siad a bheith ina spriocanna teiripeacha nua agus ina marcóirí prognóiseacha le haghaidh ailse. D'fhéadfadh GAPanna na conairí comharthaíochta a bhaineann le RCD a choigeartú le linn an phróisis seo. Is é an sampla is tipiciúla ná cosc ar bhealaí a bhaineann le RAS ag RASGAPanna chun an próiseas apoptotic i gcealla ailse a rialáil. Tá staidéir ar rialáil díolúine siadaí ag GAPanna teoranta. Anseo, trí achoimre a dhéanamh ar ról leathan GAPanna maidir le RCD a rialú, déanaimid tuairimíocht go bhféadfadh GAPanna a bheith i láthair i ngníomhaíocht imdhíonachta a bhaineann le RCD nó, níos cruinne, i bhfreagairtí imdhíonachta frith-tumóra de bharr ICD. Ina theannta sin, tá GAPanna a chuirtear in iúl i gcealla imdhíonachta riachtanach chun feidhmeanna fiseolaíocha na gcealla imdhíonachta a chothabháil agus páirt a ghlacadh in imghabháil imdhíonachta agus díolúine antitumor trí chealla imdhíonachta a rialáil.
Ceann de na sainmharcanna gníomhachtaithe de phróitéiní oncogenic RAS is ea an cumas bac a chur ar apoptosis cealla ailse chun iomadú neamhtheoranta a fháil. D’fhéadfadh sócháin a bheith ag RAS oncogenic a chuireann in aghaidh an chosc hidrealaíoch a spreagann RASGAPanna.
Cé go bhfuil an cuardach ar dhrugaí móilíní beaga a d'fhéadfadh feidhmiú mar chomhionann le GAPanna chun hidrealú RAS-GTP a chur chun cinn molta le fada, níl aon dul chun cinn dóchasach déanta. Tá sé léirithe go ngníomhaíonn semaphorin 4D ar an receptor GAP-ghníomhach Plexin-B1 chun R-Ras a dhíghníomhachtú agus ar an mbealach sin gníomhachtú integrin agus imirce cille a rialáil [137]. Tá samplaí breise ann chun gníomhaíochtaí sonracha GAP a rialáil. Mar shampla, déanann an móilín treorach aisghabhála próitéine sintéiseach A (RGMA) receptor neogenin suas gníomhaíocht p120GAP, rud a fhágann go gcuirtear cosc ar Ras agus a éifeachtóir iarmhartach Akt [138]. D’fhéadfadh go gcuirfí bac ar fheidhm RASGAPanna in ailse freisin. Mar sin féin, tá na módúlachtaí teiripeacha le haghaidh galar NF1 a bhaineann go tipiciúil fós an-deacair, agus baineann na straitéisí reatha den chuid is mó le cosc ar chonair RAS / MEK [139]. Go hachomair, cé go bhfuil tuiscint mhaith ar fheidhmiúlacht bhunúsach na GAPanna, tá gá le tuilleadh staidéir chun tuiscint níos fearr a fháil ar an gcaoi a rialaíonn GAPanna próisis bhitheolaíocha, chun forbairt phaiteolaíoch a thuiscint i gceart, agus chun spriocanna teiripeacha a aithint.
Giorrúcháin
GAP: próitéin GTPase-ghníomhachtú; RCD: Bás cille rialaithe; GEFanna: Fachtóirí malartaithe núicléitíde Guainín; GDIanna: Coscairí díthiomsaithe núicléitíde Guainín; RGSanna: Rialtóirí comharthaíochta G próitéine; GPCR: gabhdóir cúpláilte G-próitéin; ACD: Bás cille de thaisme; PCD: Bás cille cláraithe; DISC: Coimpléasc comharthaíochta astaithe báis; TNF: Fachtóir necróis meall; TRAIL: ligand a spreagann apoptosis a bhaineann le TNF; RGS3: Rialtóir comharthaíocht G-próitéin 3; DLC1: Scriosta in ailse ae 1; DAB2IP: próitéin idirghníomhach DOC-2/DAB2; PITX1: Fosfarylation of pituitary homeobox 1; HCC: Carcanóma hepatocellular; ceRNA: RNA endogenous iomaíoch; PCa: ailse próstatach; ECT2: Seicheamh 2 ag claochlú cille epithelial; YAP: próitéin Sea-ghaolmhar; TPR: Réigiún tionscnóra tras-aistrithe; BLBC: ailse chíche basal-mhaith; LV: Soitheach lymphatic; ADCD: bás cille autophagy-spleách; mTOR: Sprioc mheicníoch de rapamycin; TMZ: Temozolomide; GBM: Glioblastoma; G3BP1: Ras-GTPaseactivating próitéin ceangailteach próitéin 1; Yops: Yersinia próitéiní Amuigh; MC: Tubaiste mitotic; MCT-1: Iolchóipeanna in urchóideacht T-chealla 1; ICD: bás cille imdhíon-ghineach; CTLanna: limficítí T cíteatocsaineacha; DAMPanna: Patrúin mhóilíneacha a bhaineann le damáiste; APCanna: Cealla a chuireann antaigin i láthair; DP: Dúbailte dearfach; NF1: Neurofbromatosis cineál 1; SCF: Fachtóir gascheall; LGG: glioma de ghrád íseal; Rasal1: Gníomhachtaithe próitéin Ras-cosúil le 1 próitéin.
Buíochas
Gabhaimid buíochas leis an Ollamh Yongguang Tao agus an Dr Li Xie, agus le Wenbing Liu as fíorú na bhfigiúirí agus na lámhscríbhinne.
Ranníocaíochtaí údair
Chuir YJ agus LC le ceapadh agus dearadh an athbhreithnithe. Scríobh HH agus SW an lámhscríbhinn. D’ullmhaigh JH agus HH na figiúirí agus an tábla. Bhailigh SJ, LL, agus YL na teistiméireachtaí agus ghlac siad páirt sa phlé. Léigh na húdair go léir an lámhscríbhinn deiridh agus d'fhaomh siad
Maoiniú
Thacaigh Fondúireacht Eolaíochta Nádúrtha Náisiúnta na Síne (81802785 [YJ], 82100490 [LC]) leis an obair seo, Fondúireacht Eolaíochta Nádúrtha Hunan Cúige na Síne (2020JJ5382 [YJ], 2020JJ5381 [LC]), Tionscadal Taighde Eolaíochta de Hunan Cúige Sláinte An Coimisiún (20200763 [WL]) agus Tionscadal Taighde Bunúsach Bhiúró Eolaíochta agus Teicneolaíochta Changsha (kq2004127 [LX]).

Infhaighteacht sonraí agus ábhar
Neamhbhainteach.
Dearbhuithe
Faomhadh eitice agus toiliú le bheith rannpháirteach
Neamhbhainteach.
Toiliú le foilsiú
Neamhbhainteach.
Leasanna iomaíocha
Dearbhaíonn na húdair nach bhfuil aon leasanna iomaíocha acu.
Sonraí an Údair
1 An tSaotharlann Eochair um Bhitheolaíocht Ainmhithe agus Gascheall Múnla i gCúige Hunan, Ollscoil Gnáth Hunan, Changsha 410013, Hunan, Daon-Phoblacht na Síne. 2 Scoil an Leighis, Hunan Gnáth Ollscoil, Changsha 410013, Hunan, Daon-Phoblacht na Síne. 3 An Roinn Máinliacht Ceann agus Muineál, Ospidéal Ailse Cleamhnaithe Scoil an Leighis Xiangya, Ollscoil Láir Theas, Changsha 410013, Hunan, Daon-Phoblacht na Síne. 4 Saotharlann Eochair Carcinogenesis agus Ionradh Ailse, an Aireacht Oideachais, An Roinn Paiteolaíochta, Ospidéal Xiangya, Scoil an Leighis Bunúsach, Ollscoil Lár Theas, Changsha 410078, Hunan, Daon-Phoblacht na Síne.
Tagairtí
1. Wennerberg K, Rossman KL, Der CJ. Sracfhéachaint ar an superfamily Ras. J Cill Sci. 2005; 118(Pt 5):843–6.
2. Takai Y, Sasaki T, Matozaki T. Próitéiní beaga GTP-ceangailteach. Fisiol Ath. 2001;81(1):153–208.
3. Bos JL, Rehmann H, Wittinghofer A. GEFanna agus GAPanna: gnéithe ríthábhachtacha i rialú próitéiní G beag. cill. 2007; 129(5):865–77.4. Cherfls J, Zeghouf M. GTPasanna beaga a rialáil ag GEFanna, GAPanna, agus GDIanna. Fisiol Ath. 2013;93(1):269–309.
5. Ligeti E, Welti S, Schefzek K. Cosc agus deireadh a chur le freagraí fiseolaíocha ag próitéiní gníomhacha GTPase. Fisiol Ath. 2012;92(1):237–72.
6. Ross EM, Wilkie TM. Próitéiní gníomhachtaithe GTPase do phróitéiní heterotriméireacha G: rialtóirí comharthaíochta G próitéine (RGS) agus próitéiní cosúil le RGS. Annu Rev Biochem. 2000; 69:795–827.
7. Schefzek K, Ahmadian MR, Kabsch W, Wiesmuller L, Lautwein A, Schmitz F, Wittinghofer A. Coimpléasc Ras-RasGAP: bunús struchtúrach do ghníomhachtú GTPase agus a caillteanas i mutants Ras oncogenic. Eolaíocht. 1997; 277(5324):333–8.
8. Schefzek K, Shivalingaiah G. Ras-shonrach GTPase-gníomhachtú próitéiní struchtúir, meicníochtaí, agus idirghníomhaíochtaí. Dearcadh Cuan an Earraigh Fuar Med. 2019; 9(3): agus 031500.
9. Tang D, Kang R, Berghe TV, Vandenabeele P, Kroemer G. Innealra móilíneach bás cille rialaithe. Cill Res. 2019; 29(5):347–64.
10. Galluzzi L, Vitale I, Aaronson SA, Abrams JM, Adam D, Agostinis P, Alnemri ES, Altucci L, Amelio I, Andrews DW, Annicchiarico-Petruzzelli M, Antonov AV, Arama E, Baehrecke EH, Barlev NA, Bazan NG, Bernassola F, Bertrand MJM, Bianchi K, Blagosklonny MV, Blomgren K, Borner C, Boya P, Brenner C, Campanella M, Candi E, Carmona-Gutierrez D, Cecconi F, Chan FK, Chandel NS, et al. Meicníochtaí móilíneacha báis cille: moltaí an Choiste Ainmníochta ar Bhás Cille 2018. Difríocht Bás Cille. 2018; 25(3): 486–541.
11. Maiuri MC, Zalckvar E, Kimchi A, Kroemer G. Féin-ithe agus féinmharú: crosstalk idir autophagy agus apoptosis. Nat Rev Mol Cell Biol. 2007; 8(9):741–52.
12. Kerr JF. Neacróis crapadh: modh ar leith báis cheallacha. J Pathol. 1971; 105(1):13–20.
13. Carneiro BA, El-Deiry WS. Díriú ar apoptosis i teiripe ailse. Nat Rev Clin Oncol. 2020; 17:395-417.
14. Czabotar PE, Lessene G, Strasser A, Adams JM. Rialú apoptosis ag an teaghlach próitéin BCL-2: impleachtaí don fhiseolaíocht agus teiripe. Nat Rev Mol Cell Biol. 2014; 15(1):49–63.
15. Seyrek K, Ivanisenko NV, Richter M, Hillert LK, Konig C, Lavrik IN. bás cille a rialú trí mhodhnuithe iar-aistrithe ar phróitéiní DED. Treochtaí Cell Biol. 2020; 30(5):354–69.
16. Tai WT, Chen YL, Chu PY, Chen LJ, Hung MH, Shiau CW, Huang JW, Tsai MH, Chen KF. Próitéin tyrosine phosphatase 1B dephosphorylates PITX1 agus rialaíonn p120RasGAP i carcinoma hepatocellular. Heipiteolaíocht. 2016; 63(5): 1528–43.
17. Vanli G, Sempoux C, Widmann C. Laghdaíonn an modúl braite struis caspase-3/p120 RasGAP minicíocht ailse ae ach ní chuireann sé isteach ar mharthanas foriomlán i lucha gáma-ionradaithe agus carcanaigine-chóireáilte. Mol Carcinog. 2017; 56(6):1680–4.
18. Yang JY, Michod D, Walicki J, Murphy BM, Kasibhatla S, Martin SJ, Widmann C. Tá scoilteacht pháirteach RasGAP ag caspáis ag teastáil le haghaidh maireachtáil cille i gcoinníollacha strus éadroma. Mol Cell Biol. 2004; 24(23): 10425–36.
19. Lu S, Zhou J, Sun Y, Li N, Miao M, Jiao B, Chen H. Is é an noncoding RNA HOXD-AS1 rialtóir criticiúil ar an feinitíopa metastasis agus apoptosis i carcinoma hepatocellular daonna. Ailse Mol. 2017; 16(1):125.
20. Déanann Guo X, Xiang C, Zhang Z, Zhang F, Xi T, Zheng L. Díláithriú Bax ag BMF idirghabháil ar STARD13 3'apoptosis cealla ailse brollaigh a tharchuirtear le UTR ar mhodh miRNA-spleách. Mol Pharm. 2018; 15(1):63–71.
21. Sánchez-Martín D, Otsuka A, Kabashima K, Ha T, Wang D, Qian X, Lowy DR, Tosato G. Éifeachtaí easnamh DLC1 ar chosc ar fhás teagmhála cille endothelial agus dul chun cinn angiosarcoma. J Natl Cancer Inst. 2018; 110(4):390–9.
22. Bellazzo A, Di Minin G, Collavin L. Bloc a haon, scaoil céad. Meicníochtaí díghníomhaithe DAB2IP in ailse. Difríocht Bás Cille. 2017; 24(1):15–25.
23. Zhou J, Ning Z, Wang B, Yun EJ, Zhang T, Pong RC, Fazli L, Gleave M, Zeng J, Fan J, Wang X, Li L, Hsieh JT, He D, Wu K. Tugann caillteanas DAB2IP friotaíocht ailse próstatach le teiripe díothachta androgen trí STAT3 a ghníomhachtú agus apoptosis a chosc. Cealla Bás Dis. 2015; 6:e1955.
24. Yang XM, Cao XY, He P, Li J, Feng MX, Zhang YL, Zhang XL, Wang YH, Yang Q, Zhu L, Nie HZ, Jiang SH, Tian GA, Zhang XX, Liu Q, Ji J, Zhu X, Xia Q, Zhang ZG. Cuireann overexpression de Rac GTPase gníomhachtú próitéin 1 le iomadú cealla ailse trí chomharthaíocht dobhareach a laghdú chun cytokinesis a chur chun cinn. Gaistreintreolaíocht. 2018; 155(4): 1233-49.
25. Tatsumoto T, Xie X, Blumenthal R, Okamoto I, Miki T. Is fachtóir malartaithe é Human ECT2 do GTPases Rho, fosfarlaithe i gcéimeanna G2/M, agus baint aige le cítocinesis. J Cill Biol. 1999; 147(5):921–8.
26. Chen J, Xia H, Zhang X, Karthik S, Pratap SV, Ooi LL, Hong W, Hui KM. Rialaíonn ECT2 an ais chomharthaíochta Rho/ERK chun atarlú luath i gcarcanóma hepatocellular daonna a chur chun cinn. J Hepatol. 2015; 62(6): 1287–95.
27. Lawson CD, Fan C, Mitin N, Baker NM, George SD, Graham DM, Perou CM, Burridge K, Der CJ, Rossman KL. Nochtann anailís tras-sgrìobhaidh Rho GTPase róil oncogenic do phróitéiní a ghníomhaíonn le GTPase i ailse chíche basal-mhaith. Ailse Res. 2016; 76(13):3826–37.
28. Lapinski PE, Lubeck BA, Chen D, Doosti A, Zawieja SD, Davis MJ, King PD. Rialaíonn RASA1 feidhm comhlaí soithí limfeach i lucha. J Clin Infheistiú. 2017; 127(7):2569–85.
29. Wang Z, Huang H, He W, Cong B, Hu H, Fan Y, Liao J, Wang L, Mei Y, Liu W, Xiong X, Peng J, Xiao Y, Huang D, Quan D, Li Q, Cosnaíonn Xiong L, Zhong P, Wang G. Rialtóir comharthaíochta G-próitéin 5 cardiomyocytes i gcoinne apoptosis le linn ischemia-ath-fhrithsheasmhacht cairdiach in vitro i lucha trí chosc a chur ar bhealaí comharthaíochta JNK1/2 agus P38 araon. Biochem Biophysis Res Commun. 2016; 473(2):551–7.
30. Wang H, Fan L, Wang H, Ma X, Du Z. Rialaíonn Amyloid beta léiriú agus feidhm AIP1. J Mol Neurosci. 2015; 55(1):227–32.
31. Sirohi K, Swarup G. Lochtanna san uathphagy de bharr sócháin a bhaineann le glaucoma in optiniúirin. Ex Eye Res. 2016; 144:54-63.
32. Shen HM, Codogno P. Bás cille uathphagic: ollphéist Loch Nis nó speiceas i mbaol? Útphagy. 2011; 7(5):457–65.
33. Kriel J, Loos B. An mhaith, an t-olc agus an t-uathphagosome: iniúchadh ar cheisteanna gan freagra maidir le bás cille atá ag brath ar uathphagy. Difríocht Bás Cille. 2019; 26(4):640–52. 34. Lindqvist LM, Simon AK, Baehrecke EH. Ceisteanna reatha agus conspóidí féideartha san autophagy. Diosca bás cille. 2015; 1:1–7.
35. Amaravadi R, Kimmelman AC, White E. Léargais le déanaí ar fheidhm autophagy in ailse. Genes Dev. 2016; 30(17):1913–30.
36. Kimmelman AC, White E. Autophagy agus meitibileacht meall. Metab Cille. 2017; 25(5): 1037–43.
37. Kanzawa T, Kondo Y, Ito H, Kondo S, Germano I. Ionduchtú bás cille autophagic i gcealla glioma urchóideacha ag trí-ocsaíd arsanaic. Ailse Res. 2003; 63(9): 2103–8.
38. Dasari SK, Bialik S, Levin-Zaidman S, Levin-Salomon V, Merrill AH Jr, Futerman AH, Kimchi A. Aithníonn scáileán RNAi ar fud Signalome GBA1 mar idirghabhálaí dearfach ar bhás cille uathphagic. Difríocht Bás Cille. 2017; 24(7): 1288–302.
39. Zein L, Fulda S, Kogel D, agus Wijk SJL. Meicníochtaí a bhaineann go sonrach le Organelle maidir le bás cille uathphaga-chleithiúnach de bharr drugaí. Maitrís Biol. 2021; 100-101:54-64.
40. Elgendy M, Sheridan C, Brumatti G, Martin SJ. Cuireann léiriú oncogenic Ras-spreagtha de Noxa agus Beclin-1 bás cille uathphagach chun cinn agus cuireann sé teorainn le maireachtáil chlonogenic. Cill Mol. 2011; 42(1):23–35.
41. Stenmark H. Rab GTPases mar chomhordaitheoirí an tráchta vesicle. Nat Rev Mol Cell Biol. 2009; 10(8):513–25.
42. Hyttinen JM, Niittykoski M, Salminen A, Kaarniranta K. Aibiú uathphagosomes agus endosomes: príomhról do Rab7. Biochim Biophysis Acta. 2013; 1833(3):503–10.
43. Szatmari Z, Sass M. Róil uathphagacha na GTPases beaga Rab agus a rialtóirí réamhtheachtacha: athbhreithniú. Útphagy. 2014; 10(7):1154–66.
44. Pantoom S, Konstantinidis G, Voss S, Han H, Hofnagel O, Li Z, Wu YW. Earcaíonn RAB33B an coimpléasc ATG16L1 chuig an phagafór trí phróitéin neamhchanónach atá ceangailteach RAB. Útphagy. 2020. https://doi.org/10.1080/ 15548627.2020.1822629.
45. Itoh T, Kanno E, Uemura T, Waguri S, Fukuda M. OATL1, úrscéal autophagosome-cónaitheach Rab33B-GAP, rialaíonn aibiú autophagosomal. J Cill Biol. 2011; 192(5):839–53.
46. Moskalenko S, Henry DO, Rosse C, Mirey G, Camonis JH, Bán MA. Is coimpléasc efector Ral é an eisocyst. Nat Cell Biol. 2002; 4(1):66–72.
For more information:1950477648nn@gmail.com